
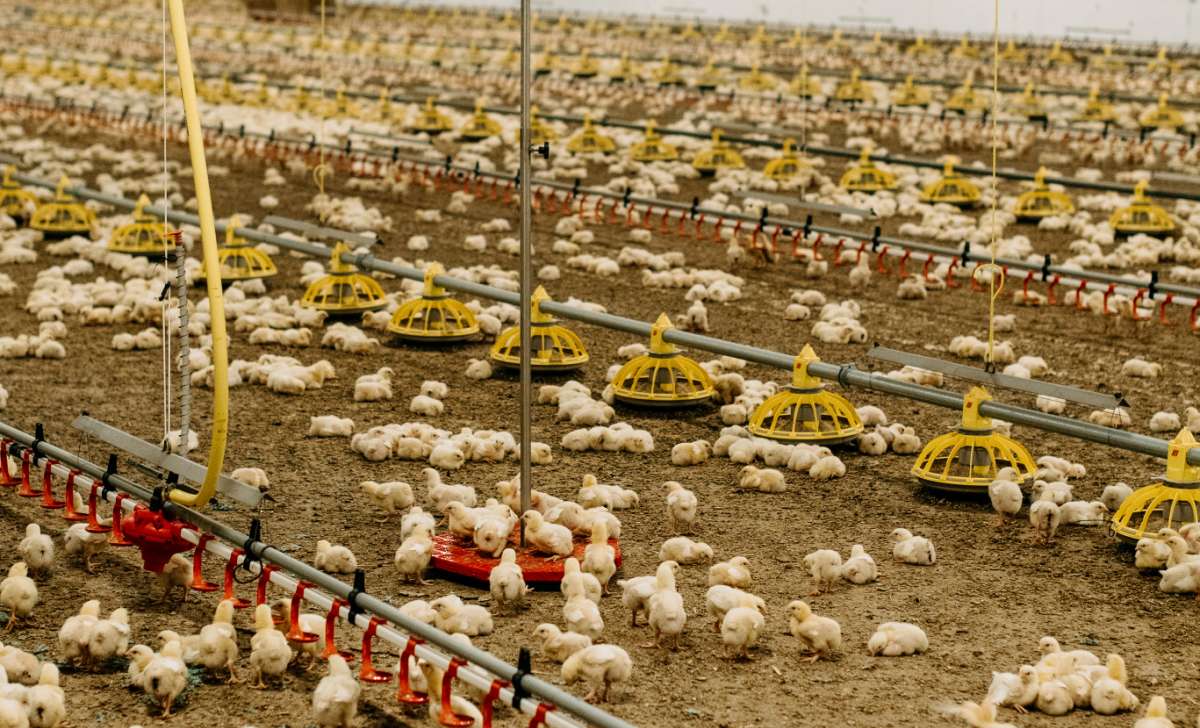
El rendimiento de los pollos de engorde a largo plazo está estrechamente relacionado con la calidad de los pollitos de un día en el momento de su alojamiento. Aunque el éxito del lote suele atribuirse al manejo en la granja, sus bases se establecen mucho antes. La calidad del pollito depende de las condiciones previas a la incubación, de los parámetros aplicados durante ella y del manejo inmediatamente posterior al nacimiento.
El momento de la eclosión y, especialmente, la duración de la ventana de nacimiento desempeñan un papel decisivo en el desarrollo temprano. Durante esa ventana, los pollitos que ya han nacido permanecen expuestos a la temperatura y la humedad elevadas del compartimento de nacimiento. Este artículo examina los factores que determinan su duración. Primero aborda aspectos previos a la incubación, como la edad de las reproductoras, las características del huevo y las condiciones de almacenamiento. Después analiza las principales variables de incubación —temperatura, humedad, volteo de los huevos y concentraciones de oxígeno y dióxido de carbono— que condicionan el momento de la eclosión y la amplitud de la ventana de nacimiento (Bergoug et al., 2013).
Ventana de nacimiento
La ventana de nacimiento es un indicador importante del éxito y la uniformidad de la incubación. Se define como el intervalo entre la salida del primer pollito y la del último dentro de una misma carga de incubadora. Su duración depende principalmente de la temperatura de incubación y debe controlarse con cuidado dentro del periodo de incubación comercial habitual, de 508 a 518 horas, para retirar los pollitos del compartimento de nacimiento en el momento adecuado.
Una ventana prolongada o poco sincronizada obliga a los primeros pollitos en nacer a permanecer demasiado tiempo en un entorno cálido y húmedo. Esto favorece la deshidratación, el estrés y las diferencias de rendimiento tras el nacimiento. Si, además, se retrasan las operaciones posteriores, la vacunación y el transporte, los pollitos pueden pasar hasta 72 horas sin alimento ni agua. Un ayuno tan prolongado perjudica considerablemente el crecimiento temprano, el desarrollo y la supervivencia cuando llegan a la granja (Willemsen et al., 2010).
Factores que afectan a la ventana de nacimiento
Características del huevo
El peso, el tamaño y la estructura de la cáscara influyen físicamente en la duración de la incubación y en el desarrollo embrionario. Existe una correlación positiva clara entre el peso del huevo y el tiempo total hasta la eclosión: los huevos pequeños suelen eclosionar antes, mientras que los de mayor peso necesitan más tiempo. Por ejemplo, una investigación encontró un tiempo medio de eclosión de 488 horas para huevos de 52 g, frente a hasta 494 horas para huevos de 72 g (Burton y Tullett, 1985).
Los huevos grandes también contienen embriones más pesados con una porosidad relativa de la cáscara similar. Por ello, les resulta más difícil disipar el calor metabólico hacia el microentorno que los rodea. Si durante la segunda mitad de la incubación no se reduce activamente la temperatura —por ejemplo, de 37,5 °C a 36,5 °C—, la retención de calor puede causar estrés térmico, aumentar la mortalidad embrionaria temprana o tardía y alterar la ventana de nacimiento (Lourens et al., 2005). Asimismo, el grosor de la cáscara y la cantidad y el tamaño de sus poros determinan la eficacia con la que el embrión intercambia gases, fluidos y calor con el entorno. Esto repercute en la incubabilidad general (Hulet et al., 2007).
Lote de reproductoras
La edad de las gallinas reproductoras modifica las características de los huevos e introduce otras variables que afectan al momento de la eclosión. Entre las 27 y las 60 semanas, el peso medio del huevo aumenta de 55 g a 70 g. Dado que los huevos más pesados tardan más en eclosionar, el envejecimiento del lote desplaza de forma natural el tiempo habitual de nacimiento (Tona et al., 2001).
En las reproductoras de mayor edad también disminuyen la fertilidad y la incubabilidad. Esta última puede caer hasta el 73 % entre las semanas 59 y 61, principalmente por el aumento de la mortalidad embrionaria total. En el extremo opuesto, los lotes muy jóvenes sometidos a raciones restringidas o insuficientes pueden transferir menos nutrientes al huevo, lo que favorece la muerte embrionaria tardía y una menor uniformidad de los pollitos (Abiola et al., 2008).
Implicaciones para la ventana de nacimiento: Las cargas de las incubadoras comerciales suelen reunir huevos de distintos pesos o procedentes de reproductoras de diferentes edades. Esa mezcla tiende a ampliar la ventana de nacimiento. Una carga con pesos muy variables o edades de reproductoras diversas dará lugar, de forma natural, a eclosiones menos sincronizadas y a un intervalo mayor entre el primer y el último pollito. Las diferencias en la capacidad de los embriones para disipar calor y en sus tiempos habituales de incubación contribuyen a este resultado.
Almacenamiento de los huevos
El almacenamiento prolongado retrasa el inicio y el momento de máxima eclosión, con un efecto acumulativo sobre el tiempo total necesario para incubar los huevos. Según una investigación, los huevos almacenados durante 3 días alcanzan el punto máximo de nacimiento —cuando ha eclosionado el 50 % de los pollitos— a las 486 horas. Los almacenados durante 18 días necesitan 18 horas adicionales de incubación (Tona et al., 2003). Varios estudios confirman esta demora y estiman que cada día de almacenamiento añade aproximadamente entre 0,7 y 1,28 horas al periodo total de incubación (Tiwary y Maeda, 2005). Por ello, las plantas de incubación deben prever más tiempo para maximizar la incubabilidad de los huevos almacenados durante más días.
Sin embargo, los datos de Tona et al. (2003) y Mather y Laughlin (1976) muestran que un almacenamiento de 14 a 18 días retrasa considerablemente el tiempo medio total de incubación sin ampliar la ventana de nacimiento. Es decir, la eclosión se desplaza en conjunto a un momento posterior, pero el intervalo entre el primer y el último pollito no necesariamente se extiende ni pierde sincronización.
Temperatura
Los embriones de pollo son ectotermos y no pueden regular por sí mismos su temperatura corporal. Por tanto, la temperatura ambiental durante la incubación controla directamente la velocidad de su desarrollo. Las temperaturas elevadas, entre 39,5 °C y 40 °C, aceleran el desarrollo embrionario y adelantan la eclosión, aunque aumentan considerablemente la mortalidad embrionaria tardía (Leksrisompong et al., 2007). Por el contrario, temperaturas bajas cercanas a 36 °C, especialmente durante el último tercio de la incubación, reducen la actividad metabólica del embrión, prolongan el periodo de incubación y retrasan el nacimiento (Yildirim y Yetisir, 2004).
Humedad
La humedad es el principal factor ambiental que controla la pérdida de peso del huevo durante la incubación. También influye directamente en el estado físico del pollito al nacer. El intercambio de humedad y gases entre el huevo y su entorno depende tanto de la humedad de la incubadora como de las características naturales de la cáscara, entre ellas su grosor y la cantidad de poros.
No está claramente establecido que la humedad de la incubadora modifique por sí sola el momento de la eclosión. Sí se conoce su efecto sobre la calidad y la supervivencia de los pollitos cuando la ventana de nacimiento se prolonga. Con una humedad relativa baja, cercana al 45 %, los huevos pierden bastante más peso durante la incubación. Esto da lugar a pollitos más pequeños, más deshidratados y más propensos a presentar ombligos sin cicatrizar, aunque físicamente están mejor adaptados a las condiciones de deshidratación posteriores al nacimiento. Una humedad relativa más alta, próxima al 55 %, limita la pérdida de peso del huevo y produce pollitos más pesados al nacer. No obstante, como retienen más humedad, tienden a perder peso con mayor rapidez si quedan expuestos a temperaturas elevadas después de la eclosión (Barbosa et al., 2008).
Concentraciones de dióxido de carbono
Las concentraciones de gases dentro de la incubadora afectan tanto a la viabilidad embrionaria como al momento y la sincronización de la eclosión. Elevar gradualmente el CO₂ hasta situarlo entre el 1 % y el 1,2 % durante los primeros 10 días de incubación adelanta el nacimiento. La mayor concentración de este gas acelera el desarrollo físico del embrión, especialmente entre los días 6 y 10 (De Smit et al., 2006). Sin embargo, esa exposición temprana al CO₂ también amplía la ventana de nacimiento (De Smit et al., 2006).
El adelanto de la eclosión se relaciona biológicamente con un pH más bajo de la albúmina y una mayor presión parcial de CO₂ en la cámara de aire del huevo. Durante el propio proceso de nacimiento, las concentraciones de CO₂ también desencadenan cambios fisiológicos que influyen directamente en el momento de la rotura externa de la cáscara y en las etapas finales de la eclosión (Bruggeman et al., 2007).
Concentraciones de oxígeno
La reducción del oxígeno, que se produce de forma natural a mayor altitud, ralentiza el desarrollo del embrión. Los niveles bajos afectan negativamente a su ritmo de crecimiento, y una hipoxia intensa con un 10 % de oxígeno puede comprometer por completo su viabilidad (Szdzuy et al., 2008). Una hipoxia moderada del 15 %, mantenida durante periodos de seis días durante la incubación, reduce considerablemente el crecimiento embrionario frente a las condiciones normales. Si ocurre durante la etapa crítica de rotura interna de la cáscara, limita la captación de oxígeno del pollito y modifica su peso final al nacer (Chan y Burggren, 2005).
El momento en que falta oxígeno también determina la gravedad de sus consecuencias. La hipoxia resulta especialmente letal durante los primeros once días de incubación (E0 a E10), una fase decisiva para la formación de las estructuras corporales. En cambio, durante los últimos diez días (E11 a E18), los órganos del embrión pueden activar respuestas compensatorias que favorecen su supervivencia con poco oxígeno (Zhang y Burggren, 2012).
La disponibilidad de oxígeno se convierte en un límite estricto durante las etapas finales de la incubación. Por eso, aumentarla artificialmente puede acortar considerablemente los tiempos de desarrollo. Aplicar una hiperoxia del 60 % entre los días 16 y 18 supera la limitación de difusión impuesta por la cáscara, permite un crecimiento más rápido del embrión y adelanta su desarrollo y la eclosión. Exposiciones breves al 60 % de oxígeno durante 48 horas en etapas intermedias y tardías —días 10 a 11, 14 a 15 y 18 a 19— aumentan significativamente la masa total del embrión y de sus órganos vitales (Van Golde et al., 1998). Estos resultados deben interpretarse con cautela por la antigüedad de la investigación: los genotipos actuales podrían responder de otra manera.
Luz
La duración de la exposición a la luz también influye en la sincronización embrionaria y la mortalidad. Iluminar los huevos durante la incubación, ya sea de forma casi continua —de 23 a 24 horas de luz— o intermitente —12 horas de luz—, acorta la ventana de nacimiento y mejora la incubabilidad general en comparación con la incubación convencional en oscuridad (Riaz et al., 2021).
El programa de iluminación intermitente parece especialmente beneficioso: reduce la mortalidad embrionaria y eleva los niveles de melatonina en el día 19 de incubación (Riaz et al., 2021; Archer y Mench, 2014). Por el contrario, un régimen de luz continuo puede ocasionar efectos secundarios negativos, como el aumento de la temperatura de la cáscara y daños estructurales en los ojos de las aves (Rozenboim et al., 2004; Archer et al., 2009).
También se ha observado que determinadas longitudes de onda, en particular la luz LED verde de 522 nm y de entre 520 y 525 nm, reducen el tiempo total hasta la eclosión frente a la incubación en completa oscuridad (Wang et al., 2020). Esta aceleración se asocia con un aumento de la hormona del crecimiento y del factor de crecimiento similar a la insulina durante el desarrollo embrionario cuando se aplica luz LED verde de 565 nm a 15 lux (Zhang et al., 2014).
Volteo de los huevos
El ángulo de giro de los huevos durante la incubación tiene un efecto directo, incluso a nivel molecular, sobre la eficacia con la que el embrión utiliza los nutrientes para avanzar hacia la eclosión. En la práctica industrial habitual se voltean los huevos con un recorrido de 90°, hasta alcanzar 45° a cada lado de la vertical. Reducir estos ángulos aumenta la mortalidad embrionaria y la frecuencia de embriones mal posicionados. La ausencia total de volteo, o incubación estática, tiene consecuencias especialmente graves en determinadas etapas del desarrollo, pues frena el crecimiento embrionario y el intercambio de gases (Elibol y Brake, 2004):
1. Etapa temprana (días 3 a 7): Es una fase especialmente crítica. Si los huevos no se voltean durante este periodo, se dificulta la expansión del área vasculosa —la red vascular inicial— y se interrumpe la producción de líquido subembrionario. Esto reduce de forma permanente el ritmo de crecimiento del embrión y disminuye la incubabilidad final (Baggot et al., 2002).
2. Etapa tardía (días 12 a 19): Detener el volteo durante este último tercio del desarrollo limita el crecimiento embrionario tardío al perjudicar el consumo de oxígeno a través del sistema de intercambio gaseoso corioalantoideo (Pearson et al., 1996).
Conclusión
Mejorar la incubabilidad y reducir la ventana de nacimiento exige controlar un conjunto de variables relacionadas entre sí, tanto antes como durante la incubación. La edad de las reproductoras y el tiempo de almacenamiento son factores principales, ya que determinan el tamaño del huevo y su calidad inicial. Dentro de la incubadora, las condiciones ambientales no pueden gestionarse por separado: cualquier cambio en la calefacción, la refrigeración o la ventilación modifica a la vez la temperatura de la cáscara, la humedad y las concentraciones de gases. Además, estas últimas deben ajustarse de forma dinámica durante la segunda mitad de la incubación para maximizar la incubabilidad.
El gran desafío de las plantas de incubación modernas consiste en gestionar los gradientes variables del microclima tridimensional dentro de máquinas de gran tamaño. Para ello deben equilibrar la temperatura del aire con la temperatura real de la cáscara, un ajuste cada vez más importante debido a las mayores exigencias metabólicas de los embriones modernos seleccionados genéticamente.
Fuentes citadas
Abiola, S. S., Meshioye, O. O., Oyerinde, B. O., & Bamgbose, M. A. (2008). Effect of egg size on hatchability of broiler chicks. Archivos de zootecnia, 57(217), 83-86.
Archer, G. S., & Mench, J. A. (2014). The effects of the duration and onset of light stimulation during incubation on the behavior, plasma melatonin levels, and productivity of broiler chickens. Journal of animal science, 92(4), 1753-1758.
Archer, G. S., Shivaprasad, H. L., & Mench, J. A. (2009). Effect of providing light during incubation on the health, productivity, and behavior of broiler chickens. Poultry science, 88(1), 29-37.
Baggott, G. K., Deeming, D. C., & Latter, G. V. (2002). Electrolyte and water balance of the early avian embryo: effects of egg turning. Avian and Poultry Biology Reviews, 13(2), 105-119.
Barbosa, V. M., Cancado, S. V., Baiao, N. C., Lana, A. M. Q., Lara, L. J. C., & Souza, M. R. (2008). Effects of relative air humidity in the hatchery and breeder hen age on the incubation yield. Arquivo Brasileiro de Medicina Veterinária e Zootecnia, 60, 741-748.
Bergoug, H., Burel, C., Guinebretiere, M., Tong, Q., Roulston, N., Romanini, C. E. B., … & Eterradossi, N. (2013). Effect of pre-incubation and incubation conditions on hatchability, hatch time and hatch window, and effect of post-hatch handling on chick quality at placement. World’s Poultry Science Journal, 69(2), 313-334.
Bruggeman, V., Witters, A., De Smit, L., Debonne, M., Everaert, N., Kamers, B., … & Decuypere, E. (2007). Acid-base balance in chicken embryos (Gallus domesticus) incubated under high CO2 concentrations during the first 10 days of incubation. Respiratory Physiology & Neurobiology, 159(2), 147-154.
Burton, F. G., & Tullett, S. G. (1985). The effects of egg weight and shell porosity on the growth and water balance of the chicken embryo. Comparative Biochemistry and Physiology Part A: Physiology, 81(2), 377-385.
Chan, T., & Burggren, W. (2005). Hypoxic incubation creates differential morphological effects during specific developmental critical windows in the embryo of the chicken (Gallus gallus). Respiratory Physiology & Neurobiology, 145(2-3), 251-263.
De Smit, L., Bruggeman, V., Tona, J. K., Debonne, M., Onagbesan, O., Arckens, L., … & Decuypere, E. (2006). Embryonic developmental plasticity of the chick: Increased CO2 during early stages of incubation changes the developmental trajectories during prenatal and postnatal growth. Comparative Biochemistry and Physiology Part A: Molecular & Integrative Physiology, 145(2), 166-175.
Elibol, O. K. A. N., & Brake, J. (2004). Identification of critical periods for turning broiler hatching eggs during incubation. British poultry science, 45(5), 631-637.
Hulet, R., Gladys, G., Hill, D., Meijerhof, R., & El-Shiekh, T. (2007). Influence of egg shell embryonic incubation temperature and broiler breeder flock age on posthatch growth performance and carcass characteristics. Poultry science, 86(2), 408-412.
Leksrisompong, N., Romero-Sanchez, H., Plumstead, P. W., Brannan, K. E., & Brake, J. (2007). Broiler incubation. 1. Effect of elevated temperature during late incubation on body weight and organs of chicks. Poultry Science, 86(12), 2685-2691.
Lourens, A., Van den Brand, H., Meijerhof, R., & Kemp, B. (2005). Effect of eggshell temperature during incubation on embryo development, hatchability, and posthatch development. Poultry science, 84(6), 914-920.
Mather, C. M., & Laughlin, K. F. (1976). Storage of hatching eggs: the effect on total incubation period. British Poultry Science, 17(5), 471-479.
Pearson, J. T., Haque, M. A., Hou, P. L., & Tazawa, H. (1996). Developmental patterns of O2 consumption, heart rate and O2 pulse in unturned eggs. Respiration Physiology, 103(1), 83-87.
Riaz, M. F., Mahmud, A., Hussain, J., Rehman, A. U., Usman, M., Mehmood, S., & Ahmad, S. (2021). Impact of light stimulation during incubation on hatching traits and post-hatch performance of commercial broilers. Tropical animal health and production, 53(1), 107.
Rozenboim, I., Biran, I., Chaiseha, Y., Yahav, S., Rosenstrauch, A., Sklan, D., & Halevy, O. (2004). The effect of a green and blue monochromatic light combination on broiler growth and development. Poultry science, 83(5), 842-845.
Szdzuy, K., Fong, L. M., & Mortola, J. P. (2008). Oxygenation and establishment of thermogenesis in the avian embryo. Life Sciences, 82(1-2), 50-58.
Tiwary, A. K., & Maeda, T. (2005). Effects of egg storage position and injection of solutions in stored eggs on hatchability in chickens (Gallus domesticus). The Journal of Poultry Science, 42(4), 356-362.
Tona, K., Bamelis, F. B. V. V. M. J. O. E., De Ketelaere, B., Bruggeman, V., Moraes, V. M., Buyse, J., … & Decuypere, E. (2003). Effects of egg storage time on spread of hatch, chick quality, and chick juvenile growth. Poultry science, 82(5), 736-741.
Tona, K., Bamelis, F., Coucke, W., Bruggeman, V., & Decuypere, E. (2001). Relationship between broiler breeder’s age and egg weight loss and embryonic mortality during incubation in large-scale conditions. Journal of Applied Poultry Research, 10(3), 221-227.
van Golde, J. M. C. G., Borm, P. J., Wolfs, M., Gerver, W., & Blanco, C. E. (1998). The effect of hyperoxia on embryonic and organ mass in the developing chick embryo. Respiration physiology, 113(1), 75-82.
Wang, P., Sun, Y., Fan, J., Zong, Y., Li, Y., Shi, L., … & Chen, J. (2020). Effects of monochromatic green light stimulation during embryogenesis on hatching and posthatch performance of four strains of layer breeder. Poultry science, 99(11), 5501-5508.
Willemsen, H., Kamers, B., Dahlke, F., Han, H., Song, Z., Pirsaraei, Z. A., … & Everaert, N. (2010). High-and low-temperature manipulation during late incubation: effects on embryonic development, the hatching process, and metabolism in broilers. Poultry Science, 89(12), 2678-2690.
Yildirim, I., & Yetisir, R. (2004). Effects of different hatcher temperatures on hatching traits of broiler embryos during the last five days of incubation. South African Journal of Animal Science, 34(4), 211-216.
Zhang, H., & Burggren, W. W. (2012). Hypoxic level and duration differentially affect embryonic organ system development of the chicken (Gallus gallus). Poultry Science, 91(12), 3191-3201.
Zhang, L., Zhang, H. J., Wang, J., Wu, S. G., Qiao, X., Yue, H. Y., … & Qi, G. H. (2014). Stimulation with monochromatic green light during incubation alters satellite cell mitotic activity and gene expression in relation to embryonic and posthatch muscle growth of broiler chickens. Animal, 8(1), 86-93.